Entender a meia-vida dos peptídeos: t1/2, estado estacionário e acumulação
Dr. Sieglinde Klaus
Equipe de redação científica · Bergdorf Bioscience
Dr. Sieglinde Klaus
Equipe de redação científica · Bergdorf Bioscience
Dr. Sieglinde Klaus
Equipe de redação científica · Bergdorf Bioscience
A meia-vida (t1/2) de um peptídeo descreve o tempo em que a concentração plasmática cai à metade do valor inicial. Na cinética de primeira ordem usual, esse valor é independente da concentração e determina a velocidade com que uma substância é eliminada, quando se estabelece um estado estacionário e em que medida as administrações repetidas se acumulam. Este artigo explica os conceitos de forma puramente científica, exclusivamente para fins de pesquisa.
A meia-vida de eliminação é definida como o intervalo de tempo em que a concentração de uma substância no corpo cai à metade do valor inicial (Hallare & Gerriets, 2025). Em um peptídeo com t1/2 de 24 horas, após um dia ainda seriam mensuráveis 50% da quantidade inicial, após dois dias 25%, após três dias 12,5%. Essa redução à metade é a marca de uma cinética de primeira ordem, na qual a quantidade eliminada por unidade de tempo é proporcional à concentração atualmente presente.
Os peptídeos diferem enormemente: o pentadecapeptídeo gástrico BPC-157 apresentou, em ratos, após administração intravenosa de 20 microgramas por quilograma, uma meia-vida de eliminação de apenas cerca de 15,2 minutos (He et al., 2022). Peptídeos modificados, como a semaglutida, alcançam, por outro lado, cerca de 160 horas, ou seja, aproximadamente uma semana (Yang et al., 2024). Essa amplitude de minutos a semanas é a razão pela qual a meia-vida é o parâmetro central de qualquer análise farmacocinética. Você pode visualizar o perfil temporal de uma seleção de peptídeos de pesquisa com nossa calculadora de meia-vida.
A maioria das substâncias clinicamente relevantes, incluindo a maioria dos peptídeos na faixa de concentração fisiológica, segue uma cinética de primeira ordem. Nela, uma porcentagem constante da quantidade presente é eliminada por unidade de tempo, e não uma quantidade absoluta constante. A concentração cai, portanto, de forma exponencial: C(t) = C0 vezes e elevado a menos k vezes t, em que k é a constante de taxa de eliminação. Entre k e a meia-vida vale a relação t1/2 = 0,693 dividido por k, porque ln(2) é de aproximadamente 0,693.
A utilidade prática dessa relação: conhecendo a meia-vida, conhece-se todo o perfil de decaimento. Um peptídeo com t1/2 de 12 horas tem uma constante de taxa de eliminação de cerca de 0,0578 por hora. A cada hora desaparecem, portanto, cerca de 5,6% da quantidade ainda presente. Matematicamente, a constante k pode ser obtida inversamente a partir da meia-vida, dividindo 0,693 por t1/2, de modo que ambas as grandezas podem ser convertidas uma na outra a qualquer momento e descrevem sempre a mesma dinâmica de eliminação.
O caráter exponencial fica evidente quando se representa a concentração em escala logarítmica: a curva de decaimento, até então encurvada, torna-se uma reta cuja inclinação corresponde ao valor negativo da constante de taxa de eliminação. Essa linearização é a razão pela qual os farmacocinetistas apresentam com frequência os dados de eliminação em escala semilogarítmica, pois a inclinação permite ler diretamente a meia-vida. É importante distinguir essa cinética da cinética de ordem zero, na qual é eliminada uma quantidade absoluta fixa, independentemente da concentração (exemplo clássico: etanol). Nessa cinética, a concentração não cai de forma exponencial, mas linear, e o conceito de meia-vida perde sua constância, porque a meia-vida aparente depende então da concentração inicial. Tais efeitos de saturação só surgem quando enzimas ou transportadores de eliminação ficam saturados. Para as doses usuais em pesquisa, a premissa de primeira ordem é, em regra, válida e constitui a base de todos os modelos de cálculo usados neste artigo.
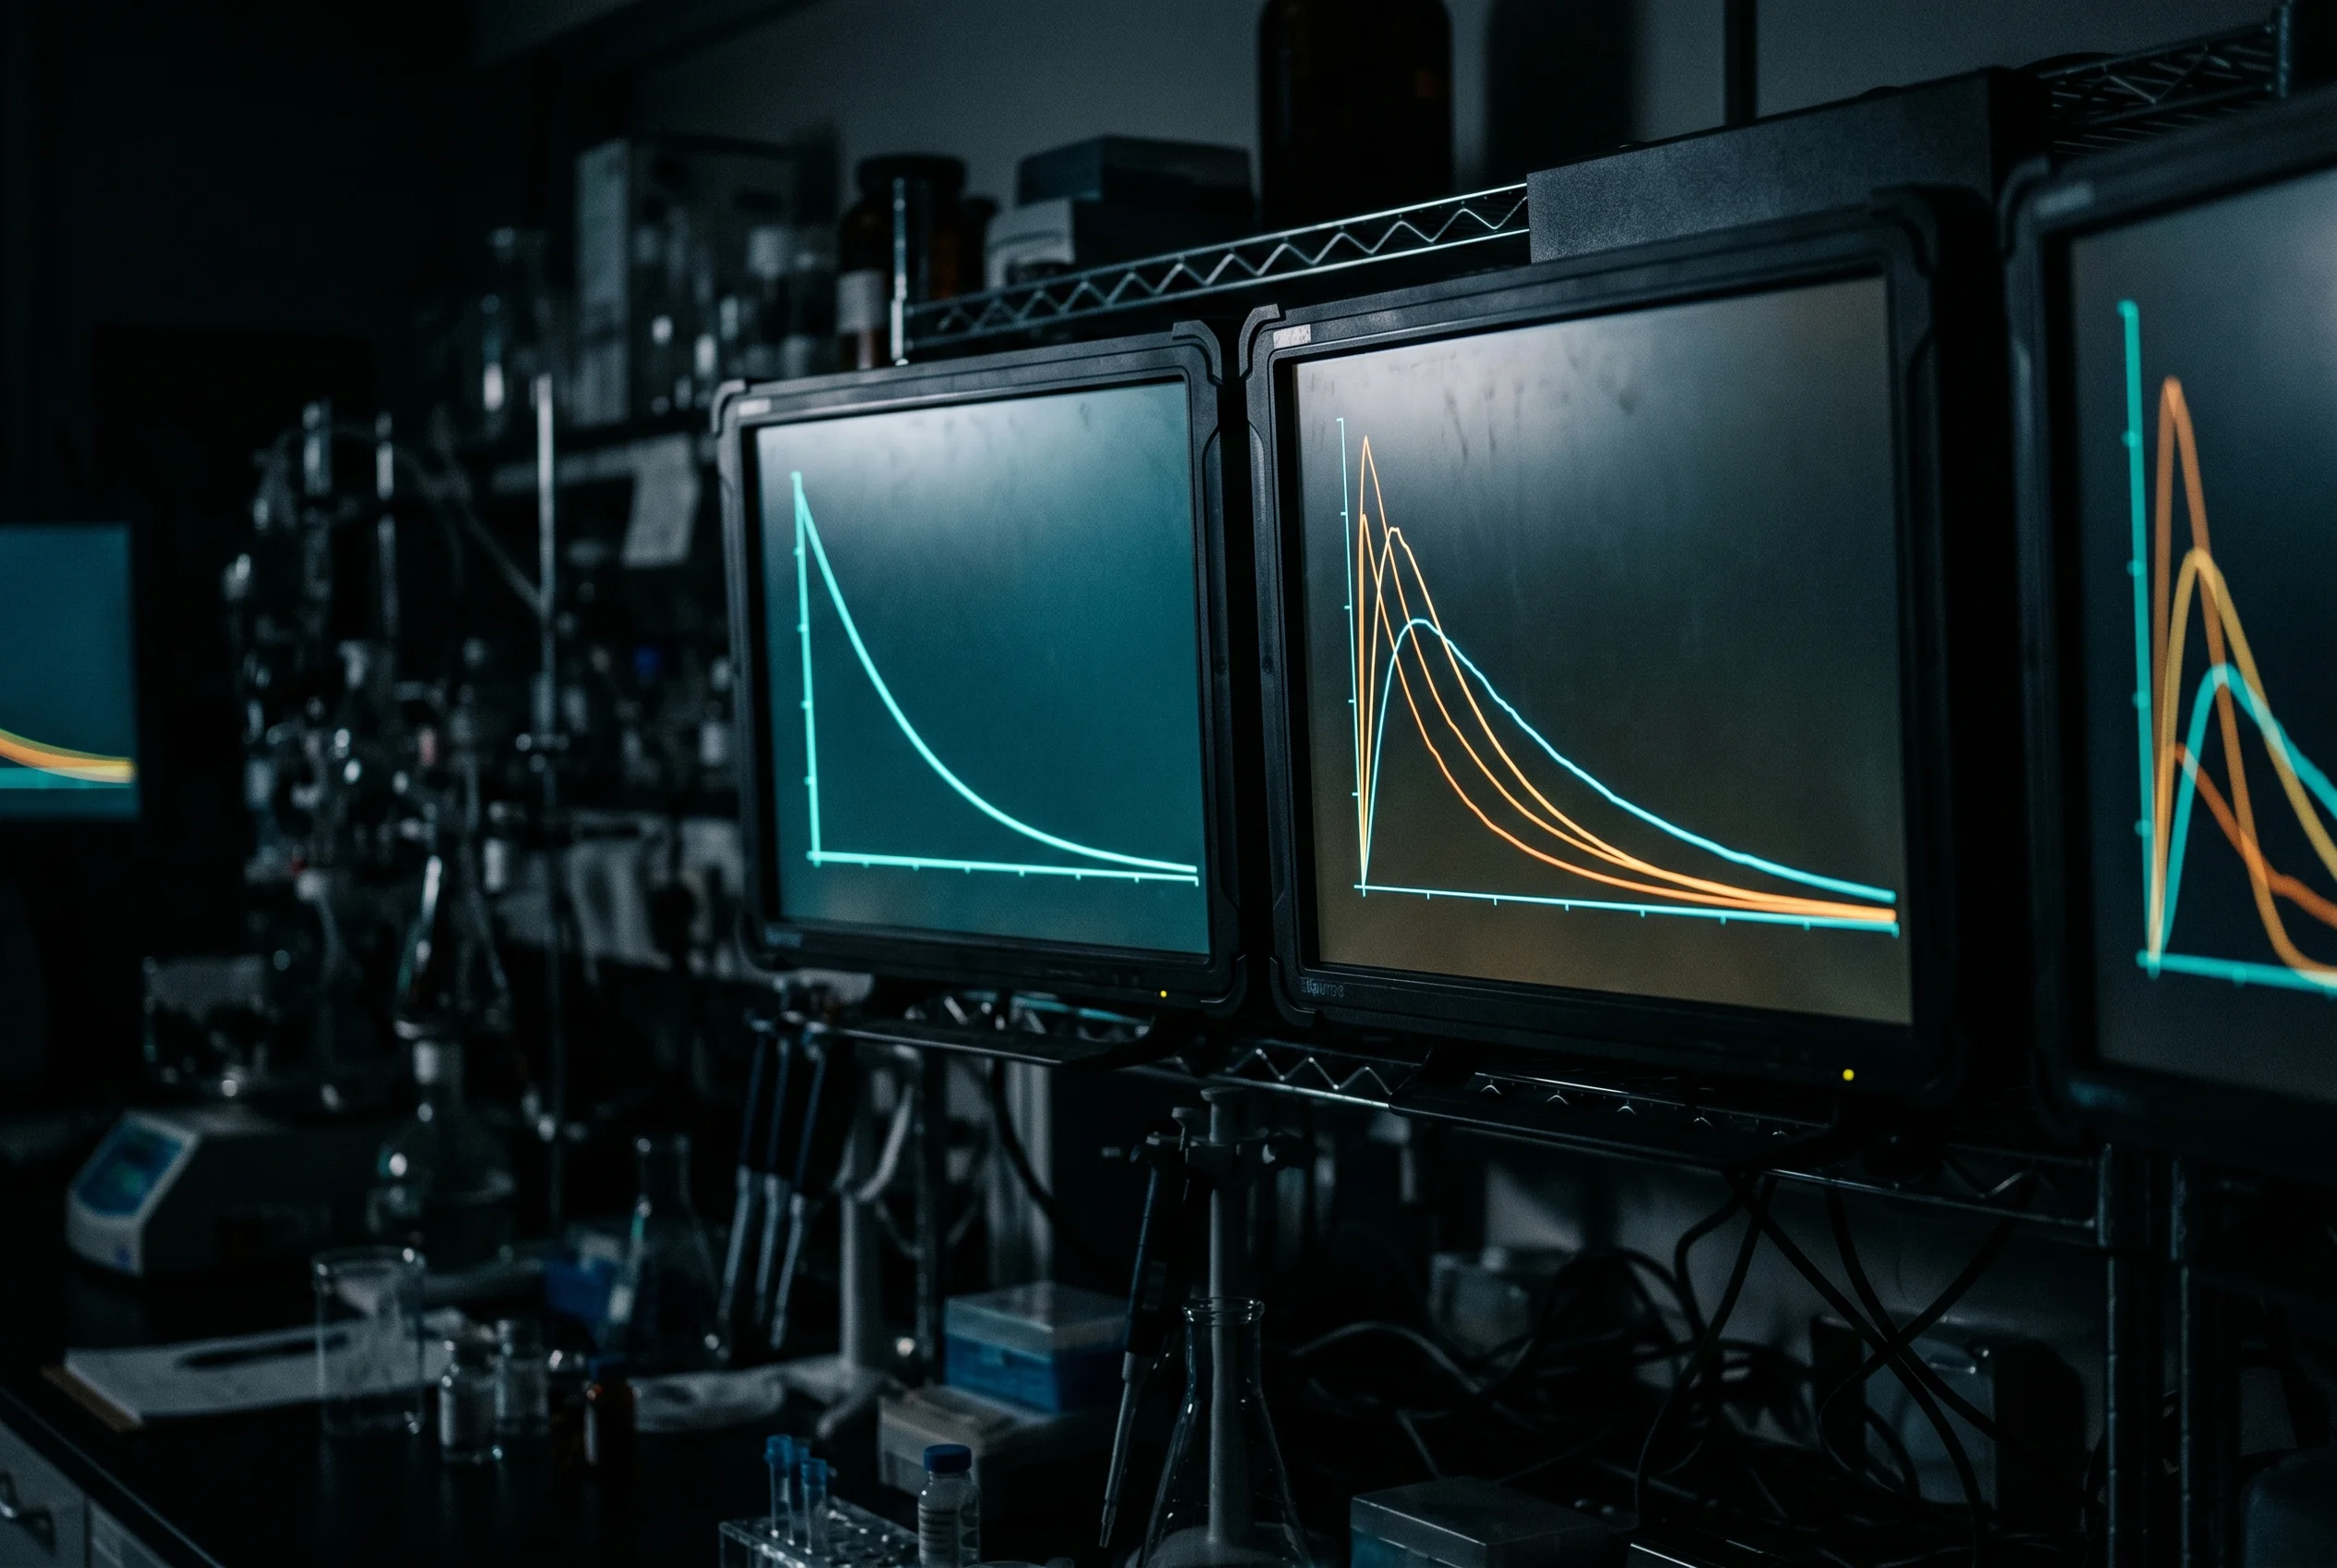
Como a redução é exponencial, a concentração nunca chega matematicamente a zero exato, mas cai muito rapidamente abaixo de um limiar praticamente relevante. A regra prática usual é: após quatro a cinco meias-vidas, considera-se que uma substância foi efetivamente eliminada, pois então restam apenas cerca de 3% a 6% da quantidade inicial (Hallare & Gerriets, 2025).
Os números em detalhe: após uma meia-vida restam 50%, após duas 25%, após três 12,5%, após quatro 6,25% e após cinco 3,125%. Transposto para peptídeos reais, isso significa janelas de tempo muito diferentes. A tirzepatida, com uma meia-vida de cerca de cinco dias (Schneck et al., 2024), teria desaparecido em grande parte do sistema após cerca de 20 a 25 dias. Já o BPC-157, com seus cerca de 15 minutos, praticamente não seria mais detectável após pouco mais de uma hora. Essa amplitude deixa claro que afirmações sobre tempo de permanência devem ser sempre feitas em relação à respectiva meia-vida. Indicações genéricas de tempo, sem referência à molécula específica, não são cientificamente confiáveis.
Um mal-entendido comum é equiparar a meia-vida plasmática à duração do efeito. A meia-vida plasmática descreve exclusivamente a velocidade com que a concentração mensurável no sangue diminui. A meia-vida funcional ou farmacodinâmica descreve, por outro lado, por quanto tempo persiste um efeito biológico mensurável. Ambas podem divergir consideravelmente quando um peptídeo se liga a receptores teciduais, ali é liberado de forma retardada ou desencadeia uma cascata de sinalização que dura mais do que a própria substância permanece detectável.
A razão está na separação espacial dos compartimentos: o que se mede no plasma é apenas a fração que circula livremente. Parte do peptídeo migra para o chamado compartimento profundo, isto é, tecidos pouco irrigados ou reservatórios ligados a receptores, dos quais retorna lentamente. Enquanto esse retorno persiste, um efeito biológico permanece, ainda que a concentração plasmática já possa ter caído abaixo do limite de detecção. A meia-vida funcional é, por isso, na prática muitas vezes mais longa que a meia-vida plasmática, e é exatamente essa diferença que explica por que alguns peptídeos, apesar da curta permanência plasmática, mostram efeitos mensuráveis por horas ou dias. Para modelos de pesquisa precisos, deve-se, portanto, indicar sempre se a referência é à cinética plasmática ou à funcional, pois as regras práticas de eliminação referem-se, a rigor, apenas à meia-vida plasmática.
A enorme amplitude das meias-vidas, de minutos em peptídeos nativos a uma semana em fármacos modernos, não é coincidência, mas resultado de modificações moleculares direcionadas. Peptídeos nativos são rapidamente clivados no corpo por peptidases e filtrados pelos rins, porque sua massa molecular geralmente está abaixo do limiar de filtração glomerular. Ambas as vias podem ser drasticamente retardadas pela adição de uma cadeia de ácido graxo, a chamada acilação ou lipidação (Menacho-Melgar et al., 2018).
O princípio baseia-se na ligação reversível à albumina, a proteína plasmática mais abundante. Um ácido graxo acoplado ao peptídeo se aloja nos bolsões de ligação para ácidos graxos da albumina. O peptídeo ligado torna-se, com isso, grande demais para a filtração renal e protegido estericamente da degradação enzimática; a albumina atua como um depósito circulante, do qual a forma livre e ativa é lentamente liberada (Menacho-Melgar et al., 2018). Por esse princípio, a semaglutida se liga à albumina em mais de 99% e possui uma cadeia lateral de diácido graxo C18, que eleva a meia-vida a cerca de 160 horas (Yang et al., 2024). A tirzepatida está ligada em cerca de 80% às proteínas plasmáticas e se distribui em um volume de distribuição de aproximadamente 10,3 litros (Schneck et al., 2024). Esses mecanismos explicam por que a meia-vida medida no sangue está inseparavelmente ligada à estrutura química da molécula e não pode ser transferida de um peptídeo para outro. Até a substituição de aminoácidos individuais, que torna uma molécula insensível à clivagem pela dipeptidil peptidase-4, pode multiplicar o tempo de permanência.
Quando doses repetidas são administradas em intervalos regulares, cada nova quantidade se soma ao que ainda resta das doses anteriores no sistema. Enquanto em cada intervalo for administrado mais do que se elimina, a concentração média sobe. Em algum momento, entrada e eliminação se igualam: estabelece-se um equilíbrio dinâmico, o chamado estado estacionário. Uma regra prática farmacológica diz que esse estado é atingido após cerca de cinco meias-vidas (Wadhwa & Cascella, 2023).
Essa regra prática decorre diretamente da função exponencial: a cada meia-vida adicional, a concentração média se aproxima do platô pela metade da lacuna ainda restante. Após uma meia-vida, cerca de 50% do platô já foi atingido, após duas cerca de 75%, após três cerca de 87,5% e após cinco já mais de 96%. Exatamente o mesmo padrão que descreve o decaimento de uma dose única rege, de forma espelhada, também a subida até o estado estacionário, razão pela qual ambos os processos duram exatamente o mesmo tempo.
Decisiva é uma propriedade muitas vezes mal compreendida: o tempo até o estado estacionário depende exclusivamente da meia-vida, não do tamanho da dose. Uma dose maior leva a um platô mais alto, mas não faz o equilíbrio ser atingido mais rapidamente. Na tirzepatida, com cerca de cinco dias de meia-vida, o estado estacionário só é atingido, portanto, após cerca de quatro semanas de administração semanal (Schneck et al., 2024). Já em peptídeos com meia-vida muito curta, de poucos minutos, quase tudo é eliminado após cada dose única, de modo que dificilmente se forma um platô clássico. O conceito de estado estacionário é, assim, relevante apenas para substâncias cuja meia-vida está na faixa do intervalo de dosagem ou acima dela. Quem quisesse atingir o platô mais rapidamente, sem elevar de forma permanente a dose de manutenção, precisaria trabalhar com uma dose de ataque única, o que, no entanto, é um conceito à parte, que foge ao escopo da análise da meia-vida isoladamente.
O fator de acumulação (Rac) quantifica em quanto a concentração no estado estacionário aumenta em relação a uma dose única. A fórmula básica é Rac = 1 dividido por (1 menos a fração que permanece no intervalo), ou, de forma equivalente, 1 dividido pela fração eliminada no intervalo. Expresso em termos da meia-vida, obtém-se Rac = 1 dividido por (1 menos 0,5 elevado a (intervalo de dosagem dividido por t1/2)). A fração que permanece no intervalo resulta, de modo equivalente, de e elevado a menos k vezes tau, em que tau é o intervalo de dosagem.
Um exemplo concreto esclarece isso: se o intervalo de dosagem for exatamente uma meia-vida, restam 50% ao fim de cada intervalo. O fator de acumulação é então 1 dividido por (1 menos 0,5) igual a 2, ou seja, a concentração no estado estacionário fica em torno do dobro da dose única. Se o intervalo for o dobro da meia-vida, restam 25% e Rac é de cerca de 1,33. Em intervalos muito curtos em relação à meia-vida, o fator sobe bastante; com um intervalo de um quarto da meia-vida, por exemplo, para cerca de 6,3. Dados reais se ajustam a esse modelo: a tirzepatida mostrou, com administração semanal, uma acumulação média de cerca de 1,7 vez, o que é coerente com a meia-vida de cerca de cinco dias e um intervalo de sete dias (Schneck et al., 2024). Quanto mais longa a meia-vida em relação ao intervalo, mais forte a acumulação.
Na prática farmacocinética, a meia-vida é a referência mais importante para a escolha do intervalo entre doses repetidas em um protocolo de pesquisa. Um intervalo muito mais curto que a meia-vida leva a forte acumulação e a altas concentrações de platô. Um intervalo que corresponde a um múltiplo da meia-vida faz a concentração cair bastante entre as doses e gera grandes oscilações entre os valores de pico e de vale.
A razão dessa relação é puramente matemática: a proporção entre a concentração de pico e a de vale no estado estacionário é determinada apenas pela razão entre o intervalo de dosagem e a meia-vida. Se o intervalo for igual a uma meia-vida, a concentração cai pela metade entre duas doses, ou seja, a razão pico-vale é de cerca de 2 para 1. Com um intervalo de quatro meias-vidas, a concentração cai para um dezesseis avos, e a amplitude de oscilação se torna extrema. São justamente as meias-vidas longas dos peptídeos modernos que explicam seus esquemas de dosagem. A semaglutida, com cerca de uma semana de meia-vida (Yang et al., 2024), e a tirzepatida, com cerca de cinco dias (Schneck et al., 2024), permitem intervalos na faixa de semanas, porque a concentração entre duas doses não cai demais. Peptídeos de vida curta, como o BPC-157, com meia-vida de minutos (He et al., 2022), desapareceriam praticamente por completo entre as doses com o mesmo esquema. A meia-vida estabelece, assim, os limites dentro dos quais é possível uma relação razoável entre amplitude de oscilação e acumulação. Quem trabalha com diferentes peptídeos pode modelar quantidades pela calculadora de peptídeos e os perfis temporais pela calculadora de meia-vida.
Um exemplo resolvido reúne os conceitos anteriores. Suponhamos que um peptídeo de pesquisa tenha meia-vida de 48 horas e seja adicionado a cada 24 horas na mesma quantidade. Primeiro, a constante de taxa de eliminação: k = 0,693 dividido por 48, igual a cerca de 0,0144 por hora. A fração que permanece no intervalo de 24 horas é e elevado a menos 0,0144 vezes 24, ou seja, cerca de 0,707; assim, restam aproximadamente 70,7%.
Daí decorre o fator de acumulação: Rac = 1 dividido por (1 menos 0,707), igual a cerca de 3,4. A concentração no estado estacionário fica, portanto, em cerca de 3,4 vezes o que uma dose única produz. Até que esse estado estacionário seja atingido, passam-se cerca de cinco meias-vidas, isto é, aproximadamente 240 horas ou dez dias. Se o intervalo for ampliado para 48 horas, ou seja, exatamente uma meia-vida, a fração que permanece cai para 50% e Rac cai para 2. Se, ao contrário, for reduzido para 12 horas, ou seja, um quarto da meia-vida, a fração que permanece sobe para cerca de 0,841 e Rac sobe para cerca de 6,3. Esse exercício numérico mostra de forma clara quão sensível é a acumulação à razão entre intervalo e meia-vida. A calculadora de meia-vida faz exatamente esses cálculos por você e apresenta graficamente a curva, o estado estacionário e o fator de acumulação. O artigo O que são peptídeos? oferece ainda uma introdução básica a essa classe de moléculas.
Todos os cálculos anteriores baseiam-se no modelo de um compartimento, que trata o corpo como um único espaço homogeneamente misturado, do qual a substância desaparece com uma única constante de taxa. Esse modelo é elegante, porque funciona com uma única meia-vida, e é suficientemente preciso para muitos fins de pesquisa. No entanto, reproduz a realidade apenas de forma aproximada, pois pressupõe que um peptídeo se distribua imediata e uniformemente por todo o volume de distribuição logo após a administração.
Na realidade, muitos peptídeos não se distribuem instantaneamente. Eles fluem primeiro rapidamente para tecidos bem irrigados e só aos poucos para compartimentos menos irrigados. Disso resulta um perfil bifásico: uma fase de distribuição íngreme logo após a administração, seguida de uma fase de eliminação mais plana, na qual a concentração é mantida pela redistribuição a partir dos tecidos. Esse comportamento é descrito com mais precisão pelo modelo de dois compartimentos, que então fornece duas meias-vidas diferentes, uma meia-vida de distribuição curta e uma meia-vida terminal mais longa. Quem observa apenas um único número confunde facilmente essas duas fases e subestima a permanência, porque a fase terminal determina a permanência no tecido, enquanto a fase de distribuição reflete apenas a queda inicial e rápida da concentração plasmática.
É exatamente aqui que está a consequência prática para a modelagem: a regra prática das quatro a cinco meias-vidas refere-se à meia-vida terminal, não à fase rápida de distribuição. Quem usar por engano a meia-vida de distribuição subestimará drasticamente a duração da eliminação. Outros limites dizem respeito à cinética não linear quando há saturação dos sistemas de eliminação, aos metabólitos que são eles próprios farmacologicamente ativos e prolongam a duração efetiva do efeito, bem como à acentuada ligação tecidual, que prolonga a fase terminal. Também a suposição, usada nos exemplos de cálculo, de uma absorção imediata e completa vale apenas para a administração intravenosa; na administração subcutânea, a absorção retarda ainda mais a evolução das concentrações e pode prolongar a meia-vida aparente, um efeito conhecido como cinética flip-flop. Para a maioria dos peptídeos de pesquisa na faixa de dose usual, o modelo de um compartimento continua sendo, ainda assim, uma aproximação útil, mas convém estar consciente da simplificação e não forçar demais as regras práticas.
Não necessariamente. Uma meia-vida longa suaviza as oscilações de concentração e permite administrações menos frequentes, mas também prolonga o tempo até o estado estacionário e a permanência após a interrupção. Qual propriedade é desejável depende inteiramente do objetivo da pesquisa e não pode ser respondida de modo genérico.
Em uma cinética de primeira ordem, a meia-vida é independente da concentração e permanece constante ao longo da faixa de dose usual. Somente quando há saturação dos sistemas de eliminação, ou seja, na transição para ordem zero, a meia-vida aparente pode tornar-se dependente da dose. Para a maioria dos peptídeos de pesquisa, isso não é relevante.
Modificações moleculares direcionadas, como a substituição de aminoácidos ou a adição de cadeias de ácido graxo, aumentam a ligação à albumina e protegem da degradação enzimática (Menacho-Melgar et al., 2018). A semaglutida carrega, por exemplo, uma cadeia lateral de diácido graxo C18, que prolonga a meia-vida para cerca de 160 horas (Yang et al., 2024).
É uma boa aproximação para substâncias com cinética de primeira ordem, mas tem exceções (Wadhwa & Cascella, 2023). Substâncias com cinética não linear, acentuada ligação tecidual ou metabólitos ativos podem desviar-se consideravelmente. A regra não substitui, portanto, uma modelagem específica da substância.
Apenas para fins de pesquisa. Não destinado ao consumo humano. Equipe de redação científica: Dr. Sieglinde Klaus
A meia-vida (t1/2) de um peptídeo descreve o tempo em que a concentração plasmática cai à metade do valor inicial. Na cinética de primeira ordem usual, esse valor é independente da concentração e determina a velocidade com que uma substância é eliminada, quando se estabelece um estado estacionário e em que medida as administrações repetidas se acumulam. Este artigo explica os conceitos de forma puramente científica, exclusivamente para fins de pesquisa.
A meia-vida de eliminação é definida como o intervalo de tempo em que a concentração de uma substância no corpo cai à metade do valor inicial (Hallare & Gerriets, 2025). Em um peptídeo com t1/2 de 24 horas, após um dia ainda seriam mensuráveis 50% da quantidade inicial, após dois dias 25%, após três dias 12,5%. Essa redução à metade é a marca de uma cinética de primeira ordem, na qual a quantidade eliminada por unidade de tempo é proporcional à concentração atualmente presente.
Os peptídeos diferem enormemente: o pentadecapeptídeo gástrico BPC-157 apresentou, em ratos, após administração intravenosa de 20 microgramas por quilograma, uma meia-vida de eliminação de apenas cerca de 15,2 minutos (He et al., 2022). Peptídeos modificados, como a semaglutida, alcançam, por outro lado, cerca de 160 horas, ou seja, aproximadamente uma semana (Yang et al., 2024). Essa amplitude de minutos a semanas é a razão pela qual a meia-vida é o parâmetro central de qualquer análise farmacocinética. Você pode visualizar o perfil temporal de uma seleção de peptídeos de pesquisa com nossa calculadora de meia-vida.
A maioria das substâncias clinicamente relevantes, incluindo a maioria dos peptídeos na faixa de concentração fisiológica, segue uma cinética de primeira ordem. Nela, uma porcentagem constante da quantidade presente é eliminada por unidade de tempo, e não uma quantidade absoluta constante. A concentração cai, portanto, de forma exponencial: C(t) = C0 vezes e elevado a menos k vezes t, em que k é a constante de taxa de eliminação. Entre k e a meia-vida vale a relação t1/2 = 0,693 dividido por k, porque ln(2) é de aproximadamente 0,693.
A utilidade prática dessa relação: conhecendo a meia-vida, conhece-se todo o perfil de decaimento. Um peptídeo com t1/2 de 12 horas tem uma constante de taxa de eliminação de cerca de 0,0578 por hora. A cada hora desaparecem, portanto, cerca de 5,6% da quantidade ainda presente. Matematicamente, a constante k pode ser obtida inversamente a partir da meia-vida, dividindo 0,693 por t1/2, de modo que ambas as grandezas podem ser convertidas uma na outra a qualquer momento e descrevem sempre a mesma dinâmica de eliminação.
O caráter exponencial fica evidente quando se representa a concentração em escala logarítmica: a curva de decaimento, até então encurvada, torna-se uma reta cuja inclinação corresponde ao valor negativo da constante de taxa de eliminação. Essa linearização é a razão pela qual os farmacocinetistas apresentam com frequência os dados de eliminação em escala semilogarítmica, pois a inclinação permite ler diretamente a meia-vida. É importante distinguir essa cinética da cinética de ordem zero, na qual é eliminada uma quantidade absoluta fixa, independentemente da concentração (exemplo clássico: etanol). Nessa cinética, a concentração não cai de forma exponencial, mas linear, e o conceito de meia-vida perde sua constância, porque a meia-vida aparente depende então da concentração inicial. Tais efeitos de saturação só surgem quando enzimas ou transportadores de eliminação ficam saturados. Para as doses usuais em pesquisa, a premissa de primeira ordem é, em regra, válida e constitui a base de todos os modelos de cálculo usados neste artigo.
Como a redução é exponencial, a concentração nunca chega matematicamente a zero exato, mas cai muito rapidamente abaixo de um limiar praticamente relevante. A regra prática usual é: após quatro a cinco meias-vidas, considera-se que uma substância foi efetivamente eliminada, pois então restam apenas cerca de 3% a 6% da quantidade inicial (Hallare & Gerriets, 2025).
Os números em detalhe: após uma meia-vida restam 50%, após duas 25%, após três 12,5%, após quatro 6,25% e após cinco 3,125%. Transposto para peptídeos reais, isso significa janelas de tempo muito diferentes. A tirzepatida, com uma meia-vida de cerca de cinco dias (Schneck et al., 2024), teria desaparecido em grande parte do sistema após cerca de 20 a 25 dias. Já o BPC-157, com seus cerca de 15 minutos, praticamente não seria mais detectável após pouco mais de uma hora. Essa amplitude deixa claro que afirmações sobre tempo de permanência devem ser sempre feitas em relação à respectiva meia-vida. Indicações genéricas de tempo, sem referência à molécula específica, não são cientificamente confiáveis.
Um mal-entendido comum é equiparar a meia-vida plasmática à duração do efeito. A meia-vida plasmática descreve exclusivamente a velocidade com que a concentração mensurável no sangue diminui. A meia-vida funcional ou farmacodinâmica descreve, por outro lado, por quanto tempo persiste um efeito biológico mensurável. Ambas podem divergir consideravelmente quando um peptídeo se liga a receptores teciduais, ali é liberado de forma retardada ou desencadeia uma cascata de sinalização que dura mais do que a própria substância permanece detectável.
A razão está na separação espacial dos compartimentos: o que se mede no plasma é apenas a fração que circula livremente. Parte do peptídeo migra para o chamado compartimento profundo, isto é, tecidos pouco irrigados ou reservatórios ligados a receptores, dos quais retorna lentamente. Enquanto esse retorno persiste, um efeito biológico permanece, ainda que a concentração plasmática já possa ter caído abaixo do limite de detecção. A meia-vida funcional é, por isso, na prática muitas vezes mais longa que a meia-vida plasmática, e é exatamente essa diferença que explica por que alguns peptídeos, apesar da curta permanência plasmática, mostram efeitos mensuráveis por horas ou dias. Para modelos de pesquisa precisos, deve-se, portanto, indicar sempre se a referência é à cinética plasmática ou à funcional, pois as regras práticas de eliminação referem-se, a rigor, apenas à meia-vida plasmática.
A enorme amplitude das meias-vidas, de minutos em peptídeos nativos a uma semana em fármacos modernos, não é coincidência, mas resultado de modificações moleculares direcionadas. Peptídeos nativos são rapidamente clivados no corpo por peptidases e filtrados pelos rins, porque sua massa molecular geralmente está abaixo do limiar de filtração glomerular. Ambas as vias podem ser drasticamente retardadas pela adição de uma cadeia de ácido graxo, a chamada acilação ou lipidação (Menacho-Melgar et al., 2018).
O princípio baseia-se na ligação reversível à albumina, a proteína plasmática mais abundante. Um ácido graxo acoplado ao peptídeo se aloja nos bolsões de ligação para ácidos graxos da albumina. O peptídeo ligado torna-se, com isso, grande demais para a filtração renal e protegido estericamente da degradação enzimática; a albumina atua como um depósito circulante, do qual a forma livre e ativa é lentamente liberada (Menacho-Melgar et al., 2018). Por esse princípio, a semaglutida se liga à albumina em mais de 99% e possui uma cadeia lateral de diácido graxo C18, que eleva a meia-vida a cerca de 160 horas (Yang et al., 2024). A tirzepatida está ligada em cerca de 80% às proteínas plasmáticas e se distribui em um volume de distribuição de aproximadamente 10,3 litros (Schneck et al., 2024). Esses mecanismos explicam por que a meia-vida medida no sangue está inseparavelmente ligada à estrutura química da molécula e não pode ser transferida de um peptídeo para outro. Até a substituição de aminoácidos individuais, que torna uma molécula insensível à clivagem pela dipeptidil peptidase-4, pode multiplicar o tempo de permanência.
Quando doses repetidas são administradas em intervalos regulares, cada nova quantidade se soma ao que ainda resta das doses anteriores no sistema. Enquanto em cada intervalo for administrado mais do que se elimina, a concentração média sobe. Em algum momento, entrada e eliminação se igualam: estabelece-se um equilíbrio dinâmico, o chamado estado estacionário. Uma regra prática farmacológica diz que esse estado é atingido após cerca de cinco meias-vidas (Wadhwa & Cascella, 2023).
Essa regra prática decorre diretamente da função exponencial: a cada meia-vida adicional, a concentração média se aproxima do platô pela metade da lacuna ainda restante. Após uma meia-vida, cerca de 50% do platô já foi atingido, após duas cerca de 75%, após três cerca de 87,5% e após cinco já mais de 96%. Exatamente o mesmo padrão que descreve o decaimento de uma dose única rege, de forma espelhada, também a subida até o estado estacionário, razão pela qual ambos os processos duram exatamente o mesmo tempo.
Decisiva é uma propriedade muitas vezes mal compreendida: o tempo até o estado estacionário depende exclusivamente da meia-vida, não do tamanho da dose. Uma dose maior leva a um platô mais alto, mas não faz o equilíbrio ser atingido mais rapidamente. Na tirzepatida, com cerca de cinco dias de meia-vida, o estado estacionário só é atingido, portanto, após cerca de quatro semanas de administração semanal (Schneck et al., 2024). Já em peptídeos com meia-vida muito curta, de poucos minutos, quase tudo é eliminado após cada dose única, de modo que dificilmente se forma um platô clássico. O conceito de estado estacionário é, assim, relevante apenas para substâncias cuja meia-vida está na faixa do intervalo de dosagem ou acima dela. Quem quisesse atingir o platô mais rapidamente, sem elevar de forma permanente a dose de manutenção, precisaria trabalhar com uma dose de ataque única, o que, no entanto, é um conceito à parte, que foge ao escopo da análise da meia-vida isoladamente.
O fator de acumulação (Rac) quantifica em quanto a concentração no estado estacionário aumenta em relação a uma dose única. A fórmula básica é Rac = 1 dividido por (1 menos a fração que permanece no intervalo), ou, de forma equivalente, 1 dividido pela fração eliminada no intervalo. Expresso em termos da meia-vida, obtém-se Rac = 1 dividido por (1 menos 0,5 elevado a (intervalo de dosagem dividido por t1/2)). A fração que permanece no intervalo resulta, de modo equivalente, de e elevado a menos k vezes tau, em que tau é o intervalo de dosagem.
Um exemplo concreto esclarece isso: se o intervalo de dosagem for exatamente uma meia-vida, restam 50% ao fim de cada intervalo. O fator de acumulação é então 1 dividido por (1 menos 0,5) igual a 2, ou seja, a concentração no estado estacionário fica em torno do dobro da dose única. Se o intervalo for o dobro da meia-vida, restam 25% e Rac é de cerca de 1,33. Em intervalos muito curtos em relação à meia-vida, o fator sobe bastante; com um intervalo de um quarto da meia-vida, por exemplo, para cerca de 6,3. Dados reais se ajustam a esse modelo: a tirzepatida mostrou, com administração semanal, uma acumulação média de cerca de 1,7 vez, o que é coerente com a meia-vida de cerca de cinco dias e um intervalo de sete dias (Schneck et al., 2024). Quanto mais longa a meia-vida em relação ao intervalo, mais forte a acumulação.
Na prática farmacocinética, a meia-vida é a referência mais importante para a escolha do intervalo entre doses repetidas em um protocolo de pesquisa. Um intervalo muito mais curto que a meia-vida leva a forte acumulação e a altas concentrações de platô. Um intervalo que corresponde a um múltiplo da meia-vida faz a concentração cair bastante entre as doses e gera grandes oscilações entre os valores de pico e de vale.
A razão dessa relação é puramente matemática: a proporção entre a concentração de pico e a de vale no estado estacionário é determinada apenas pela razão entre o intervalo de dosagem e a meia-vida. Se o intervalo for igual a uma meia-vida, a concentração cai pela metade entre duas doses, ou seja, a razão pico-vale é de cerca de 2 para 1. Com um intervalo de quatro meias-vidas, a concentração cai para um dezesseis avos, e a amplitude de oscilação se torna extrema. São justamente as meias-vidas longas dos peptídeos modernos que explicam seus esquemas de dosagem. A semaglutida, com cerca de uma semana de meia-vida (Yang et al., 2024), e a tirzepatida, com cerca de cinco dias (Schneck et al., 2024), permitem intervalos na faixa de semanas, porque a concentração entre duas doses não cai demais. Peptídeos de vida curta, como o BPC-157, com meia-vida de minutos (He et al., 2022), desapareceriam praticamente por completo entre as doses com o mesmo esquema. A meia-vida estabelece, assim, os limites dentro dos quais é possível uma relação razoável entre amplitude de oscilação e acumulação. Quem trabalha com diferentes peptídeos pode modelar quantidades pela calculadora de peptídeos e os perfis temporais pela calculadora de meia-vida.
Um exemplo resolvido reúne os conceitos anteriores. Suponhamos que um peptídeo de pesquisa tenha meia-vida de 48 horas e seja adicionado a cada 24 horas na mesma quantidade. Primeiro, a constante de taxa de eliminação: k = 0,693 dividido por 48, igual a cerca de 0,0144 por hora. A fração que permanece no intervalo de 24 horas é e elevado a menos 0,0144 vezes 24, ou seja, cerca de 0,707; assim, restam aproximadamente 70,7%.
Daí decorre o fator de acumulação: Rac = 1 dividido por (1 menos 0,707), igual a cerca de 3,4. A concentração no estado estacionário fica, portanto, em cerca de 3,4 vezes o que uma dose única produz. Até que esse estado estacionário seja atingido, passam-se cerca de cinco meias-vidas, isto é, aproximadamente 240 horas ou dez dias. Se o intervalo for ampliado para 48 horas, ou seja, exatamente uma meia-vida, a fração que permanece cai para 50% e Rac cai para 2. Se, ao contrário, for reduzido para 12 horas, ou seja, um quarto da meia-vida, a fração que permanece sobe para cerca de 0,841 e Rac sobe para cerca de 6,3. Esse exercício numérico mostra de forma clara quão sensível é a acumulação à razão entre intervalo e meia-vida. A calculadora de meia-vida faz exatamente esses cálculos por você e apresenta graficamente a curva, o estado estacionário e o fator de acumulação. O artigo O que são peptídeos? oferece ainda uma introdução básica a essa classe de moléculas.
Todos os cálculos anteriores baseiam-se no modelo de um compartimento, que trata o corpo como um único espaço homogeneamente misturado, do qual a substância desaparece com uma única constante de taxa. Esse modelo é elegante, porque funciona com uma única meia-vida, e é suficientemente preciso para muitos fins de pesquisa. No entanto, reproduz a realidade apenas de forma aproximada, pois pressupõe que um peptídeo se distribua imediata e uniformemente por todo o volume de distribuição logo após a administração.
Na realidade, muitos peptídeos não se distribuem instantaneamente. Eles fluem primeiro rapidamente para tecidos bem irrigados e só aos poucos para compartimentos menos irrigados. Disso resulta um perfil bifásico: uma fase de distribuição íngreme logo após a administração, seguida de uma fase de eliminação mais plana, na qual a concentração é mantida pela redistribuição a partir dos tecidos. Esse comportamento é descrito com mais precisão pelo modelo de dois compartimentos, que então fornece duas meias-vidas diferentes, uma meia-vida de distribuição curta e uma meia-vida terminal mais longa. Quem observa apenas um único número confunde facilmente essas duas fases e subestima a permanência, porque a fase terminal determina a permanência no tecido, enquanto a fase de distribuição reflete apenas a queda inicial e rápida da concentração plasmática.
É exatamente aqui que está a consequência prática para a modelagem: a regra prática das quatro a cinco meias-vidas refere-se à meia-vida terminal, não à fase rápida de distribuição. Quem usar por engano a meia-vida de distribuição subestimará drasticamente a duração da eliminação. Outros limites dizem respeito à cinética não linear quando há saturação dos sistemas de eliminação, aos metabólitos que são eles próprios farmacologicamente ativos e prolongam a duração efetiva do efeito, bem como à acentuada ligação tecidual, que prolonga a fase terminal. Também a suposição, usada nos exemplos de cálculo, de uma absorção imediata e completa vale apenas para a administração intravenosa; na administração subcutânea, a absorção retarda ainda mais a evolução das concentrações e pode prolongar a meia-vida aparente, um efeito conhecido como cinética flip-flop. Para a maioria dos peptídeos de pesquisa na faixa de dose usual, o modelo de um compartimento continua sendo, ainda assim, uma aproximação útil, mas convém estar consciente da simplificação e não forçar demais as regras práticas.
Não necessariamente. Uma meia-vida longa suaviza as oscilações de concentração e permite administrações menos frequentes, mas também prolonga o tempo até o estado estacionário e a permanência após a interrupção. Qual propriedade é desejável depende inteiramente do objetivo da pesquisa e não pode ser respondida de modo genérico.
Em uma cinética de primeira ordem, a meia-vida é independente da concentração e permanece constante ao longo da faixa de dose usual. Somente quando há saturação dos sistemas de eliminação, ou seja, na transição para ordem zero, a meia-vida aparente pode tornar-se dependente da dose. Para a maioria dos peptídeos de pesquisa, isso não é relevante.
Modificações moleculares direcionadas, como a substituição de aminoácidos ou a adição de cadeias de ácido graxo, aumentam a ligação à albumina e protegem da degradação enzimática (Menacho-Melgar et al., 2018). A semaglutida carrega, por exemplo, uma cadeia lateral de diácido graxo C18, que prolonga a meia-vida para cerca de 160 horas (Yang et al., 2024).
É uma boa aproximação para substâncias com cinética de primeira ordem, mas tem exceções (Wadhwa & Cascella, 2023). Substâncias com cinética não linear, acentuada ligação tecidual ou metabólitos ativos podem desviar-se consideravelmente. A regra não substitui, portanto, uma modelagem específica da substância.
Apenas para fins de pesquisa. Não destinado ao consumo humano. Equipe de redação científica: Dr. Sieglinde Klaus
